三特异IL-2R抗体αβγVHH-48的EC50达0.015 nM
Lykhopiy等把抗CD25/CD122/CD132的VHH装成三特异激动抗体,先导αβγVHH-48在HEKαβγ上的pSTAT5 EC50为0.015 nM,接近人IL-2的0.010 nM;再做成CD25二价并改几何后,可在皮摩尔甚至飞摩尔级偏向性激活Treg。
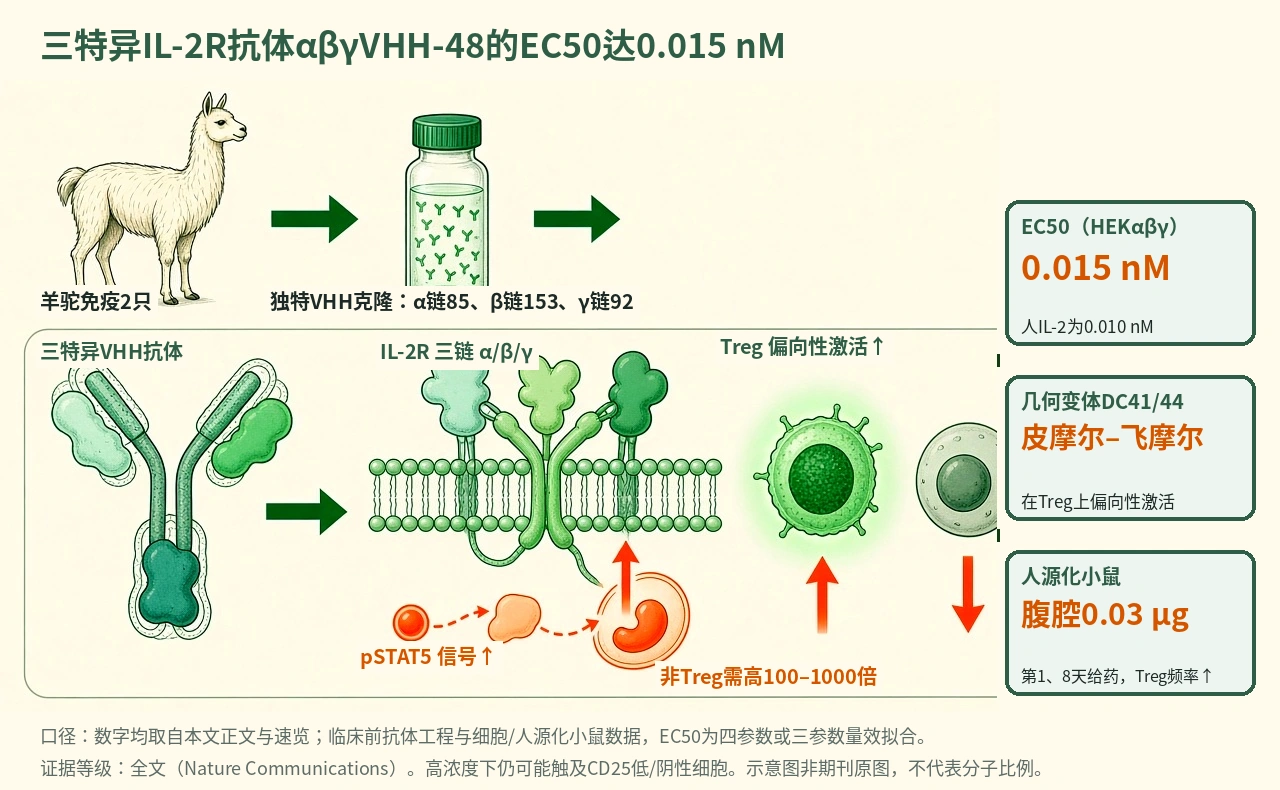
- VHH覆盖IL-2R三个亚基
- βγ交联触发pSTAT5
- CD25臂把效价偏向Treg
- 二价CD25与几何再优化
示意图概括抗体如何从βγ双抗升级为αβγ三抗:CD122与CD132的VHH负责成信号,CD25 VHH决定细胞选择性和剂量敏感;再加第二个CD25结构域并改空间排列后,Treg与非Treg窗口进一步拉开。示意图由 AI 生成,依据原文结果绘制,非期刊原图,不代表分子比例。
研究背景与待解问题
调节性T细胞(Treg)依赖IL-2维持耐受。中等亲和IL-2R由CD122和CD132组成(原文给出Kd约1 nM),广泛见于记忆CD8和NK;加上CD25后形成高亲和三聚体(原文给出Kd约10 pM),Treg组成性高表达CD25。低剂量IL-2虽能扩Treg,但半衰期短,也容易打到非Treg。已有的IL-2突变体、PEG化和抗体复合物都在选择性与信号强度之间折中。
Lykhopiy(兼通讯)与Van Rompaey、Schlenner团队的假设是:与其改细胞因子,不如用抗体同时抓住三个受体亚基,做成必须交联才工作的激动剂,让CD25把活性锁在Treg上。
研究设计
两只羊驼用编码人IL-2Rα/β/γ的质粒DNA免疫,共6针、间隔2周。噬菌体三轮筛选后,按独特VHH计,得到抗CD25 85个(15个CDR3家族)、抗CD122 153个(38个家族)、抗CD132 92个(7个家族);SPR表位分箱分别为3、4、5个。每亚基取10–13个克隆做成VHH-Fc;β和γ各取表位代表做成16个βγ双抗。Fc带LALAPG消除效应功能,并以F405L/K409R做可控Fab臂交换,把αVHH与βγVHH重组成三抗。
功能先在过表达三亚基的HEKαβγ上看结合和pSTAT5,再转到静息人PBMC,比较Treg(CD25高)与NK、Tconv、CD8、NKT。体内把人PBMC(每鼠20×10^6)输入NSG,第1、8天腹腔给0.03 µg或PBS。随后保持特异性和价态不变,只重排VHH空间位置,做成5个二价CD25的几何变体(DC41、DC43、DC44、DC45、DC60)。
核心结果
只有同时抓住β和γ才出信号
单抗或α与β、α与γ的组合都不能诱导pSTAT5;多数同时含β、γ VHH的分子可以,部分βγ双抗的最大信号接近重组IL-2。无功能的γVHH-35例外。结合弱但信号强的βγ克隆说明,效价不简单等于亲和。三抗的细胞结合主要由αVHH决定,pSTAT5最大信号却跟着亲本βγ走:CD25管谁被打中、剂量敏感;βγ管信号能不能装起来、有多强。
αVHH-2把效价普遍推向CD25阳性细胞
加上抗CD25后,相对亲本βγ的EC50倍数改善在含βγVHH-11的三抗中最大;αVHH-2则对所有βγ骨架给出最大倍数改善。据此选定αβγVHH-48(αVHH-2、βVHH-19、γVHH-27),HEKαβγ上EC50为0.015 nM,人IL-2为0.010 nM。在PBMC上,打IL-2结合位点的高亲和CD25 VHH(αVHH-2、8、10)对Treg最敏感;低亲和或非IL-2表位则弱。用整合效价与最大反应的ΔAUC看,αβγVHH-48和αβγVHH-61的Treg/非Treg比值最高,优于其他三抗和IL-2。讨论汇总称,带抗CD25的三抗在体外对Treg的效价比IL-2高逾100倍,对CD25阴性细胞激活很少。纯化Treg培养7天,αβγVHH-48扩增少于IL-2但强于βγVHH-11;在全PBMC里,两条三抗的Treg增殖接近IL-2,βγ双抗几乎不扩Treg。Treg增殖指数高于βγVHH-11(Kruskal-Wallis,调整P=0.0339)。
0.03 µg在NSG模型中拉开Treg比值
剂量滴定把第1天最优剂量定为0.03 µg。αβγVHH-48提高Treg频率,不改变Tconv或CD8频率,从而显著提高Treg/CD4和Treg/CD8比值;Ki-67+ Treg增加,而非Treg的Ki-67在βγVHH-11组更高。FOXP3保持稳定。与低剂量IL-2相比,后者第7天虽扩Treg,也扩效应T细胞并加速疾病;IL-2 mutein、αβγVHH-48和后续DC41在Treg特异性和疾病结局上相当。作者指出该CD25 VHH与IL-2竞争结合,可能削弱Treg靠吸走IL-2来抑制的能力。
几何比序列更决定窗口
五个几何变体全部比原αβγVHH-48更强,符合CD25二价。最大pSTAT5随β、γ VHH相对位置而变。DC41、DC44在Treg上于个位数皮摩尔甚至飞摩尔达最大磷酸化,非Treg要高100–1000倍才出现信号;DC43、DC45、DC60更像部分激动,Treg与非Treg差别最大。因部分曲线拟合不出可靠EC50,作者用实验浓度范围内的ΔAUC(不做外推,因而低估差异)比较,仍是DC41和DC44的Treg–非Treg窗口最大。纯化Treg扩增上,DC41与αβγVHH-48相当;V91K mutein虽有选择性磷酸化,单细胞MFI太低,带不动增殖。SPR在单个亚基上看不出几何之间的结合差异,功能差来自细胞表面组装,而不是单受体位阻。
机制解读
原文实验证明:βγ必须同时被抓住才有pSTAT5,单独αβ或αγ不够,这与经典IL-2R组装一致。CD25结构域改变的是EC50而不是最大信号,βγ决定Emax。PBMC和NSG实验把这种效价差转化成Treg相对非Treg的数量优势。几何变体在组成、接头、价态相同的情况下功能仍分叉,且单亚基SPR无差异,直接支持“空间构型决定信号”。
作者推测:与IL-2竞争的CD25 VHH可能把受体拉成更接近天然IL-2占据的姿态,所以功能更好;代价是Treg少了吸IL-2这条抑制路径。高浓度下增殖回落被解释为过密体系里的非生产性占据,而不是内在激动变弱。讨论还提出,可再加Treg富集表面分子做成四特异,进一步收窄细胞谱。这些是设计推论,不是疾病模型里的疗效证明。
局限与不确定
- 绝大多数VHH不交叉小鼠IL-2R,疾病模型必须用人源化IL-2/IL-2R体系,本文体内只做到人PBMC-NSG/NOG扩增和GvHD评分,没有自身免疫疾病模型。
- HEK报告细胞的受体密度非生理;作者因此把结论重点放在PBMC。高暴露下仍不能完全排除效应细胞被激活,这是Treg偏向性IL-2类药物的共同窗口问题。
- 主要读出是STAT5;PI3K-AKT、MAPK、mTOR等对Treg代谢和稳定性的贡献未测。体内扩增Treg的抑制功能和谱系稳定性也未做深。αβγVHH-48的CD25臂与IL-2竞争,可能削弱IL-2剥夺型抑制。
临床/产业意义
相对减弱CD122结合的IL-2 mutein,这条路径是用CD25亲和力和几何去“瞄准”而不是把细胞因子本身做残。抗体半衰期也不同于野生型IL-2。若后续人源化模型和早期临床站住,这类分子适合需要扩Treg的自身免疫和移植排斥,但治疗窗仍取决于剂量:过低不够,过高会碰到CD25低的细胞。平台模块化,理论上可换成非竞争CD25 VHH,或再叠第四个Treg标志。