156个巨噬激活双抗筛出WTa2d1xCD38,IC50低至18.0 pM
Pagès-Geli等用功能优先的表面组筛选加156个异源scFv-Fc双抗,选出低亲和SIRPα诱饵×CD38分子WTa2d1xCD38;在10条淋巴瘤细胞系上IC50为18.0 pM至3.08 nM,体内可延长生存并与利妥昔单抗联用出现完全治愈。
- 功能优先表面组筛选定靶
- 异源scFv-Fc组装156个双抗
- 按杀伤与红细胞结合分群
- WTa2d1xCD38体内抗淋巴瘤
示意图概括研究主线:先以巨噬共培养功能筛选淋巴瘤表面靶点,再用knob-into-hole scFv-Fc快速交叉出156个双抗;低亲和SIRPα诱饵WTa2d1与抗CD38臂组合在保留杀伤的同时减少红细胞结合,并在NSG异种移植中显示抗瘤活性。示意图由 AI 生成,依据原文结果绘制,非期刊原图,不代表分子比例。
研究背景与待解问题
B细胞非霍奇金淋巴瘤是最常见的血液肿瘤,弥漫大B细胞淋巴瘤约占其中约35%。一线利妥昔单抗联合化疗后仍有相当比例复发或耐药;后续策略多转向T细胞,但原文引用文献称半数以上B细胞淋巴瘤存在MHC抗原提呈缺陷或检查点过表达,限制T细胞路径。巨噬细胞介导的抗体依赖吞噬(ADCP)是利妥昔单抗体内机制之一,却常被CD47/SIRPα“别吃我”信号卡住。已有CD47阻断与利妥昔单抗联用的临床探索,但系统寻找还能调动巨噬细胞的表面靶点,此前做得很少。
Pagès-Geli、Ribeiro(并列第一)与Crespo、Weiskopf团队的切口,是把“结合多少”和“能不能让巨噬细胞杀掉淋巴瘤”拆开测,再把有效组合做成可规模化生产的双抗。
研究设计
鼠侧用M-CSF诱导的骨髓巨噬与StayGold+ A20 MHC-I敲除细胞共培养,覆盖173个纯化单抗,各测单药、加抗CD47、加抗CD20三条件,7天内用荧光面积读生长或清除。人侧用原代单核细胞来源巨噬与GFP+ Raji,覆盖241个单抗,其中92个抗原与鼠库共享。随后在鼠系做64种抗体组合、在人Raji野生型/MHC-I敲除及Toledo上做11种组合。
为把组合变成单一分子,作者比较常规四质粒双抗与异源scFv-Fc(每臂一条质粒、IgG1 knob/hole)。确认scFv-Fc表达更高、结合更强、低浓度杀伤更好后(n=6次转染),交叉CD47、CD24、CD79b、CXCR4、CD40、CD95、CD38、CD71、LILRB1、CD20及PD-1等臂,CD47侧同时放入高亲和诱饵CV1和低亲和诱饵WTa2d1,共得到156个独特双抗,在Raji、Toledo、SUD-HL-8上测功能、结合、ELISA表达和人红细胞结合。体内用NSG小鼠:皮下接种1×10⁶ GFP+ Raji,或脑内接种1×10⁵荧光素酶Raji模拟原发中枢神经系统淋巴瘤,每组n=5。
核心结果
跨物种筛出巨噬可打的靶点
鼠库中抗CD24、CD95(FAS)、CD40、CXCR4、CD79b在三种条件下都能带动巨噬清除A20。人库则突出MHC-I/II组分,以及CXCR4、CD38、CD147、CD71、CD98、CD45RA。结合强度与杀伤只有中等趋势,CD24结合最强、杀伤也最强,但离群点很多,说明“结合多”不足以预测功能。抗LILRB1单药几乎无效,与抗CD47联用时抗瘤最强,符合其巨噬检查点身份。跨物种复现的靶点包括CXCR4、CD47、CD147、CD98和MHC-II。鼠源64种组合中,含抗CD24或抗CD95的多数组合几乎清掉共培养中的淋巴瘤,强于抗CD20+抗CD47;人源最有效组合包括抗CD47分别配抗B2M、LILRB1、CD71或CD38。MHC-I敲除系普遍更易被巨噬杀死。
异源scFv-Fc撑起156个双抗库
与常规CD20xCD38双抗相比,scFv-Fc在相同转染体系中滴度更高、对Raji和Toledo结合更强、更低浓度即可杀伤(双因素ANOVA,****p<0.0001)。无监督聚类把156个分子分成四类:高活性且红细胞结合低、高活性且红细胞结合高、结合但活性有限、表达折叠差。CV1臂杀伤极强但红细胞结合也强;WTa2d1、CD20或CD38臂常能兼顾杀伤与低红细胞结合。三条细胞系上,WTa2d1xCD38、WTa2d1xLILRB1和CD38xCXCR4稳定处于高效且红细胞结合低或无的一组。
WTa2d1xCD38在体外强于利妥昔单抗和达雷妥尤单抗
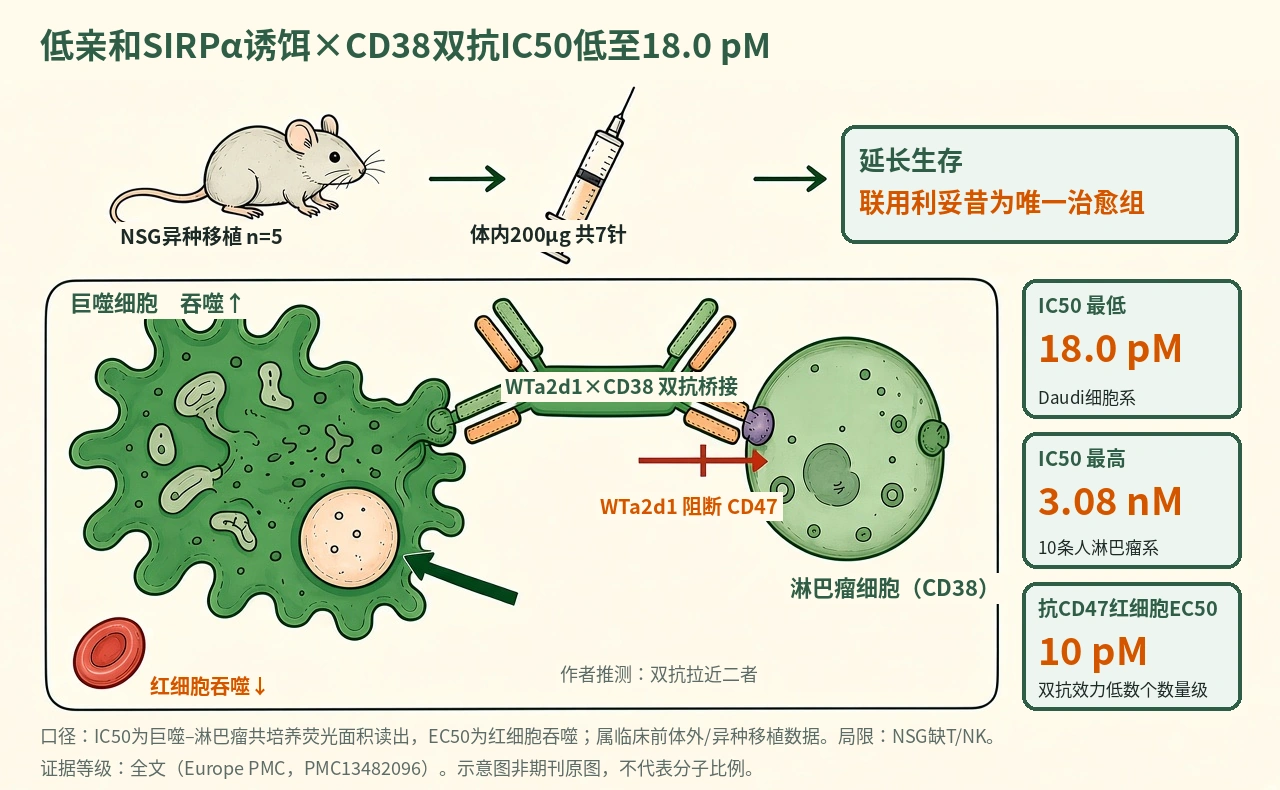
三条纯化双抗对Raji、Toledo都强,但对HBL-1只有前两条有效。因LILRB1臂不交叉小鼠同源分子,后续聚焦WTa2d1xCD38。它在10 µg/mL、144小时共培养中强于利妥昔单抗和达雷妥尤单抗,与单特异抗CD47相当;对三株利妥昔单抗耐药系仍显著增强巨噬杀伤,后两者几乎无效。十株人淋巴瘤系的IC50低至18.0 pM(Daudi)、高至3.08 nM(U-2932);MHC-I缺陷使SUD-HL-8和HBL-1的IC50改善约2–3倍。Raji上敲除CD47几乎不影响该双抗杀伤,敲除CD38则效力保留、效价轻度下降,提示单价打任一靶点即可,双靶共表达时更强。质谱和结构建模支持knob-into-hole正确组装。免疫荧光可见双抗同时结合巨噬与淋巴瘤,巨噬出现放射状微绒毛,吞噬界面染色最强。
红细胞毒性窗口与体内疗效
未分级白细胞的吞噬增加很少,WTa2d1xCD38对Toledo的吞噬强于抗CD47。24小时PBMC清除实验中,WTa2d1xCD38与CXCR4xCD38对B细胞的清除与利妥昔单抗相当,对CD3+ T细胞和NK细胞无显著清除。抗CD47诱导红细胞吞噬的EC50为10 pM,WTa2d1xCD38效力低几个数量级。皮下瘤模型中,200 µg WTa2d1xCD38或利妥昔单抗均抑制生长并延长生存,联合进一步低于单用利妥昔单抗,且为唯一完全治愈队列。脑内模型中,该双抗相对溶媒和利妥昔单抗抑制肿瘤并延长生存。
机制解读
原文实验证明:功能筛选把“能结合”和“能调动巨噬杀伤”分开,证明表面丰度不能单独预测ADCP。异源scFv-Fc消除轻链错配,使组合库可在上清水平直接筛选。聚类把高亲和CV1的红细胞结合与低亲和WTa2d1的低红细胞结合拆开,同时保留抗淋巴瘤活性。敲除实验表明该双抗可走CD38单臂,CD47缺失等效于阻断;免疫荧光支持分子在巨噬–淋巴瘤界面桥接。体内NSG模型证明分子能到达皮下和脑内病灶并产生生存获益。
作者推测:WTa2d1xCD38可能同时(i)调理肿瘤细胞、(ii)阻断CD47/SIRPα、(iii)抑制CD38介导的免疫抑制、(iv)把巨噬与肿瘤细胞拉近。放射状微绒毛被解释为有利于免疫突触。作者认为低亲和CD47结合臂是降低血液毒性、保留巨噬效应的较优几何。这些是机制模型,不是逐项体内因果拆解。
局限与不确定
- 表面组并非穷尽所有抗原和所有抗体;命中是真阳性,假阴性未知。筛选在MHC-I敲除背景下起步,利于突出先天路径,但不能代表所有临床亚型。
- NSG缺乏T、B、NK而保留髓系,可能高估CD47阻断效应;双抗对人巨噬结合强于NSG鼠巨噬,体内效力又可能被低估。作者明确提出下一步更合适的是非人灵长类毒理或早期临床试验。
- LILRB1臂因种属交叉限制未做体内;达雷妥尤单抗在B-NHL单药活性有限这一解释,是用CD47检查点来事后说明,并非本试验直接比较临床队列。
临床/产业意义
若转化成立,这条流水线给出两类可执行信息:一是巨噬可打的淋巴瘤表面靶点清单,以及不必走CD20/CD47旧组合的双抗矩阵;二是把CD47阻断做成低亲和诱饵×肿瘤抗原的双抗,而不是高亲和单抗,以换治疗指数。WTa2d1xCD38对利妥昔单抗耐药系仍有效,对CD38阳性的其他血液肿瘤也可能有外推空间,但都需要灵长类安全和人体数据。异源scFv-Fc本身降低了轻链错配,作者认为可扩展到更大组合库,甚至其他癌种或其他效应细胞。