人脑皮层类器官体外培养5年,甲基化时钟预测年龄与培养时间相关(r = 0.88–0.90)
人脑皮层类器官培养至5年,Horvath与皮层甲基化时钟预测年龄与培养时间相关(r = 0.88–0.90,中位绝对误差7.25与20.04个月)。
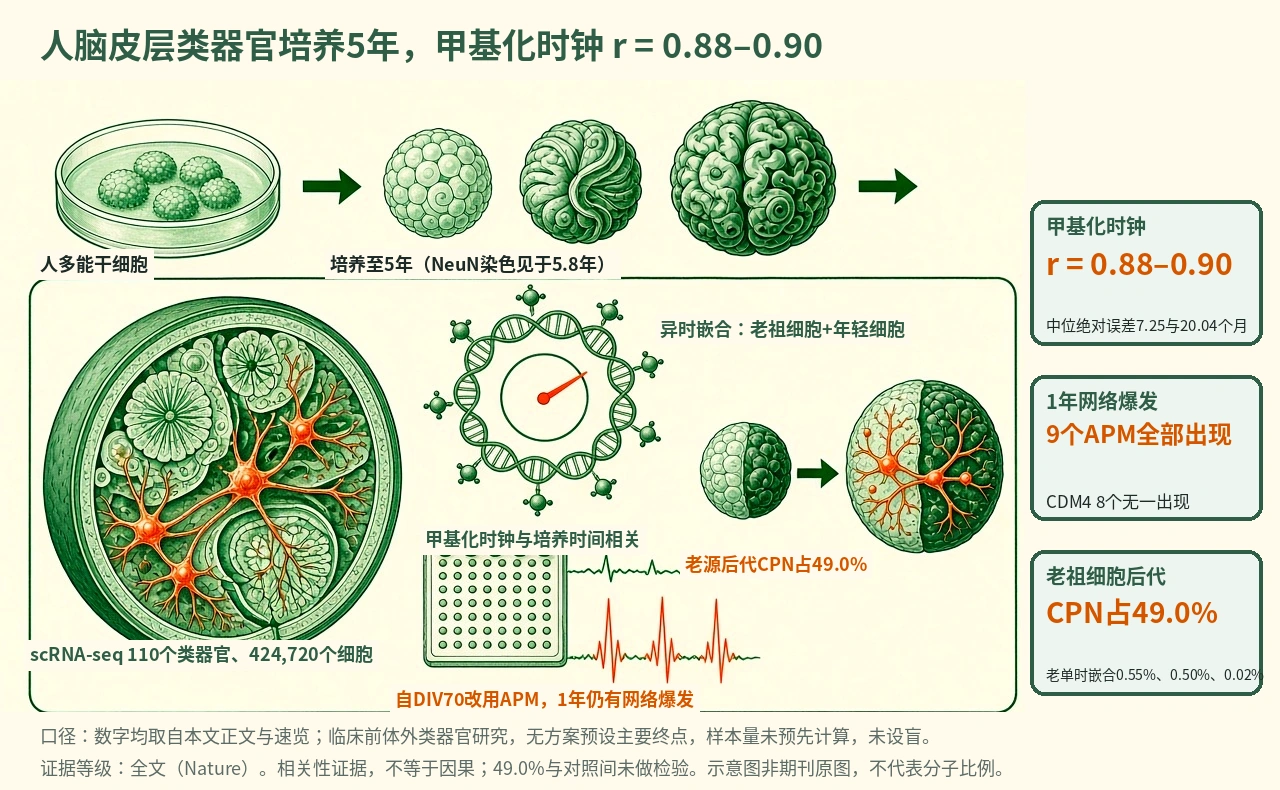
- 培养皮层类器官至5年,转录组与甲基化定年
- 自DIV70改用APM,1年时仍有网络爆发
- 老祖细胞与DIV15年轻细胞共聚集
- 老源后代中CPN占49.0%
人脑皮层类器官培养至5年,以转录组与甲基化时钟定年;自DIV70改用APM后,1年时类器官仍保留网络爆发;老祖细胞与年轻细胞共聚集后产生晚期CPN。示意图由 AI 生成,依据原文结果绘制,非期刊原图,不代表分子比例
研究背景与待解问题
人脑发育与成熟历时近二十年,出生后阶段的人类特异过程难以在动物模型中研究。人脑类器官提供了体外模型,但既有类器官大多只重现早期发育;此前一项研究将类器官培养至694天,仅用整体类器官的bulk RNA-seq和甲基化芯片分析。
不同细胞类型的长期存活能力差异明显,神经元尤其如此;除细胞存在外,还需确认神经元结构与环路活动能否在多年培养中保留。本研究将皮层类器官培养超过5年,整合单细胞转录组、全基因组甲基化、结构和功能数据,并用嵌合类器官检验祖细胞是否保留所经历时间的“记忆”。
研究设计
这是一项临床前类器官研究,无预设主要终点,也没有按组间比较设计效能或预先计算样本量,亦未设盲。皮层类器官由多株人多能干细胞(如H1、11a、PGP1)按作者既往方案生成。WGBS覆盖3个月至5年的9个时间点。嵌合实验混合9–12个月老祖细胞与DIV15年轻细胞。
scRNA-seq时间序列自15天至5年,含110个单个类器官(34个新数据、76个既往数据)、424,720个细胞,经标签转移映射到人胎儿与出生后皮层参考数据。自DIV70起改用活动许可培养基(APM,BrainPhys加GlutaMax),对照为常规CDM4,读出含电镜与3D多电极阵列(MEA)。
核心结果
转录组对应人脑发育阶段
转录层面,15天至2个月的类器官对应第一孕期胎脑,3至6个月主要对应第二孕期,9个月至5年逐步偏向晚期产前和出生后,出生后样特征在12个月后出现。DIALOGUE成熟模块MCP1–5与培养时间的Pearson r依次为−0.08、0.78、0.35、0.78和−0.72,其中MCP4被用作成熟评分。
甲基化时钟与培养时间相关
在表观遗传层面,WGBS覆盖3个月至5年的9个时间点。Horvath泛组织时钟与皮层特异时钟预测的DNAm年龄与培养时间密切相关(r = 0.88–0.90),中位绝对误差分别为7.25和20.04个月;胎儿脑时钟仅呈正向但未达显著的相关(r = 0.54,P = 0.056)。solo-WCGW位点甲基化保持稳定,提示这些变化不主要由细胞增殖驱动。
APM保留神经元与突触
常规CDM4下神经元比例随培养下降,5年样本仅余101个细胞的小型混合神经元簇。自DIV70改用APM后,9个月时SATB2+细胞增多(各9个类器官,LMM P = 2.4×10⁻⁵)。电镜显示6个月时突触密度无差异(P = 0.7),1年时APM更高(P = 0.002);位于棘突上的突触占比为25%(CDM4)对52%(APM)(Fisher P = 9.5×10⁻⁸)。
成熟评分与网络活动
兴奋性神经元成熟评分在APM中总体更高(单侧F检验,P = 4.03×10⁻²);分时间点,4个月P = 1.56×10−3,6个月P = 9.77×10−1,1年P = 3.86×10⁻⁶。3D MEA记录显示,1年时8个CDM4类器官无一出现网络爆发,9个APM类器官全部出现;2年的APM类器官仍有爆发,并可识别至少两个神经元亚群。
老祖细胞跳过早期命运
在人异时嵌合类器官中,9–12个月老祖细胞的后代中CPN占49.0%,而老单时嵌合的三个重复为0.55%、0.50%和0.02%(第3个为11个月),9个月标准类器官为1.1%;重新聚集后约2周内即产生。SATB2免疫染色比较三组(各n = 3),Kruskal–Wallis P = 0.0519,未达显著。
机制解读
原文实验证明:转录成熟评分、甲基化时钟年龄与培养时间的相关性由实验直接测得,属相关性证据。APM组在9个月时SATB2+细胞增多,1年时突触密度与棘突突触占比升高,并保留网络爆发;活动是否为因果中介,本研究未用干预实验检验。
异时嵌合实验直接显示:老祖细胞与年轻细胞共聚集后,其成熟评分低于老单时培养的祖细胞,后代CPN占49.0%,而同一嵌合体内年轻来源细胞只产生早期细胞类型。这提示老祖细胞可响应年轻细胞的诱导信号。
作者推测:作者推测,老祖细胞保留了对已完成发育步骤的“记忆”,接触早期诱导信号时仍跳过早期后代,直接产生通常需培养数月的兴奋性神经元。作者还推测,促进自发活动有利于神经元存活与成熟,加入感觉诱发活动和非神经组织等体内因素可能进一步改善类器官。
局限与不确定
- CDM4下5年样本仅余101个细胞的小型混合神经元簇,未能细分;1年后染色特异性下降,抗体解读受限,2至3年样本需改用新鲜冷冻方案;异时嵌合成功率很低。
- 1.5年每组仅n = 2,60个月scRNA-seq仅n = 2,样本量未预先计算;MEA中CDM4类器官在记录前2周才换入APM,两组培养史并不一致。
- 9个月成熟评分差异P = 5.88×10⁻²,正文却称除6个月外均显著;SATB2三组比较P = 0.0519;胎脑时钟P = 0.056;皮层时钟中位绝对误差20.04个月;49.0%与对照间未做检验。
- 结果均来自体外类器官,未与出生后人脑组织做直接功能比对,外推到体内成熟需谨慎。
临床/产业意义
若这些结果能在更多供体和更大样本中重复,长期培养的类器官可能成为研究人类出生后皮层成熟的体外平台,并用于检验时间记录机制。APM作为培养条件,可能为需要保持兴奋性神经元的长期实验提供参考。
祖细胞时间记忆的结果提示,类器官可借异时嵌合设计探测命运潜能,但目前这只是体外观察。作者还提到,进一步整合感觉诱发活动与非神经组织,是改进类器官的方向。目前没有涉及患者或治疗终点的数据。